
コドン使用バイアス (コドン バイアスとも呼ばれる) は、特定のアミノ酸配列をエンコードするためにヌクレオチド トリプレット (コドン) を選択的に使用して、種のタンパク質コード遺伝子をエンコードすることです。配列内の各アミノ酸は、1 つ (メチオニンとトリプトファンの場合) から 6 つの異なるコドンでエンコードできます。アミノ酸をエンコードするために同義コドンが使用される頻度は、生物によって異なり、同じ生物内でも異なる場合があります。
コドンの使用パターンは種の系統とゲノム構成を反映します。 マズムダール ら. イネ科単子葉植物と非イネ科単子葉植物の違いを調査した。
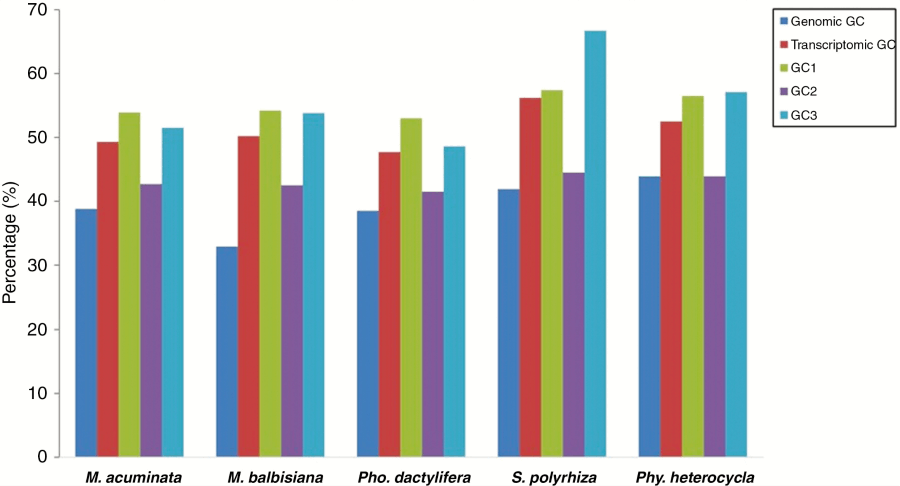
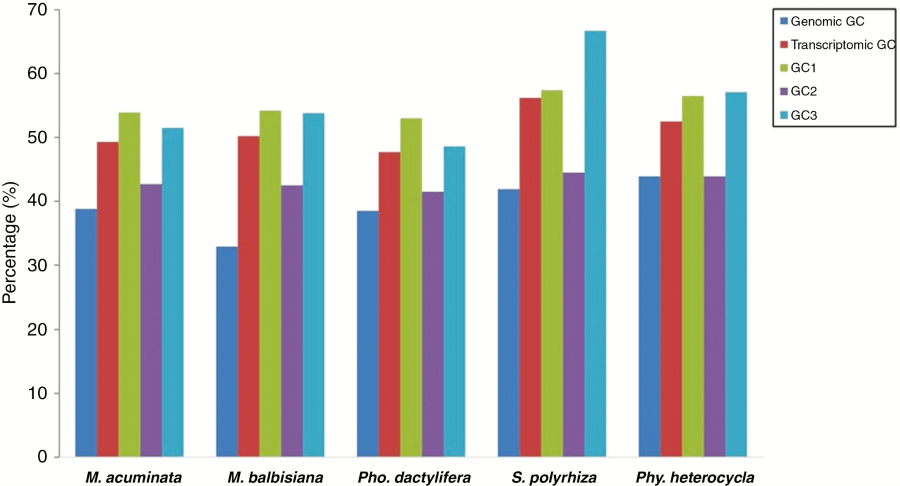
まず、単子葉植物におけるコドン使用に関する研究をレビューした。次に、完全に配列決定された4つの非イネ科単子葉植物ゲノム(ムーサ・アクミナータ, ムーサ・バルビシアーナ, ナツメヤシ (NAIST) と ウキクサ)を対象に、比較可能なトランスクリプトームデータセットが利用可能であるゲノムDNA配列を分析しました。相対的な同義コドンの使用状況、有効なコドンの数、導出された最適コドンとGC含有量について測定を行い、その関係性を調査して根底にある進化の力を推測しました。
マズムダール ら研究対象となった非イネ科単子葉植物種において、最適コドン、稀なコドン、および好ましいコドンペアコンテキストを特定した。GCの二峰性分布とは対照的に、3 (3 番目のコドン位置の GC 含有量) イネ科植物では、イネ科植物以外では単峰性の分布が見られました。分析で検出された 2 および 4 コドンのアミノ酸における G と C (および A と T) の不均衡な使用は、GC 含有量のゲノム変異の説明としての突然変異バイアス仮説を除外します。
これらの非イネ科単子葉植物の最適コドンは、3 番目のコドン位置で G/C が優先されることを示しています。これらの結果は、非イネ科単子葉植物のコドン使用とヌクレオチド組成は主に GC 偏向遺伝子変換によって決まるという概念を裏付けています。