
UV-B 放射は、私たちにとって危険であるだけでなく、光合成機構と DNA に有害な影響を与えるため、さまざまな環境で生育する植物にとって脅威でもあります。 私たちは日光を避けるだけでUV-Bから逃れることができますが、植物にはそのような幸運はなく、環境で何が彼らを襲ったかに対処しなければなりません. UV-B 放射による損傷を軽減するために植物が使用することでよく知られている方法の XNUMX つは、フラボノイドなどの UV 吸収分子の生成です。 植物が UV-B の有害な影響から保護するために使用する可能性のあるもう XNUMX つの戦略は、細胞内倍数性です。これは、その後の細胞分裂を行わずにゲノムが複製され、より多くの染色体を持つ細胞になります。
シロイヌナズナ 細胞内倍数性を受ける能力が向上した植物は、UV-B に対してより耐性があります。 しかし、これらの実験や他の同様の実験は実験室で行われたものであり、自然環境でより多くの種類の植物が UV-B から保護するためにどの程度の細胞内倍数性を利用できるかについてはほとんどわかっていません。 彼らの最近の論文で Annals of Botany、František Zedek と同僚 チェコ共和国の日陰の下層林と開放された森林の両方で自然に生育する植物種の紫外線吸収物質の濃度と細胞内倍数性の割合を調べる.
Zedek とその同僚は、すべての種が日陰の下層林で成長した場合と比較して、森林開拓地で成長した場合に UV 吸収物質の濃度が増加したことを発見しました。 一部の植物では、より高い日射量にさらされると、内倍数性の指標も大幅に増加しましたが、これはすべての種で発生したわけではありません。 興味深いことに、この内倍数性の増加は、単動原体染色体を持つ種でのみ見られました。 単動原体染色体は、細胞分裂中に XNUMX つの点を介してのみ細胞紡錘体に付着できますが、全動原体染色体は、細胞分裂時にその長さに沿ってどこでも細胞紡錘体に付着できます。 言い換えれば、染色体が XNUMX 点のみを介してではなく、その長さに沿った任意の点で紡錘体に付着できる場合、おそらく細胞内倍数性を経験するのははるかに困難です。 単動中心染色体を持つ種では、内倍数性の指標は、UV 吸収化合物の存在により大幅に増加しましたが、全中心染色体を持つ種では増加しませんでした。

これが提起する大きな問題は、なぜ一部の植物種が高い UV-B レベルに応答して内倍数性を起こすのかということです。 Zedek らは、細胞サイズが染色体数の増加に伴って増加する可能性があることを示した以前の研究を指摘し、細胞内倍数性は、他の方法では成長が停止することが知られている条件で成長を維持する方法である可能性があることを示唆しています。 興味深いことに、調査されたすべての植物種は、より高い日光の下で成長するとUV吸収物質の濃度が増加しましたが、この増加はホロセントリック染色体を持つ種ではより少なくなりました. これは、ホロセントリック染色体を持つ植物種は一般に UV-B 放射の影響を受けにくいことを示唆する以前の研究を支持していますが、その正確な理由は不明のままです。

したがって、Zedek とその同僚は、UV-B 放射の増加に応答した内倍数性は、実験シナリオに加えて、自然環境にも存在する可能性が高いことを示しています。 それらはまた、ホロセントリック染色体を持つ植物種は高レベルの UV-B 放射に対して何らかの形で感受性が低いという信念をさらに支持します。 興味深いことに、これは、陸上植物の藻類の祖先の全動原体染色体が、初期の陸上植物がおそらくさらされていることに気づいた紫外線へのより大きな曝露に抵抗するために重要であった可能性があるという仮説とよく一致しています. 他の植物種が UV-B 放射に対する可能な防御策として内倍数性を使用する正確な理由は不明のままですが、これについて将来どのような知識が生まれ、植物が今日生育するさまざまな環境とどのように関連するのかを見るのは興味深いでしょう.
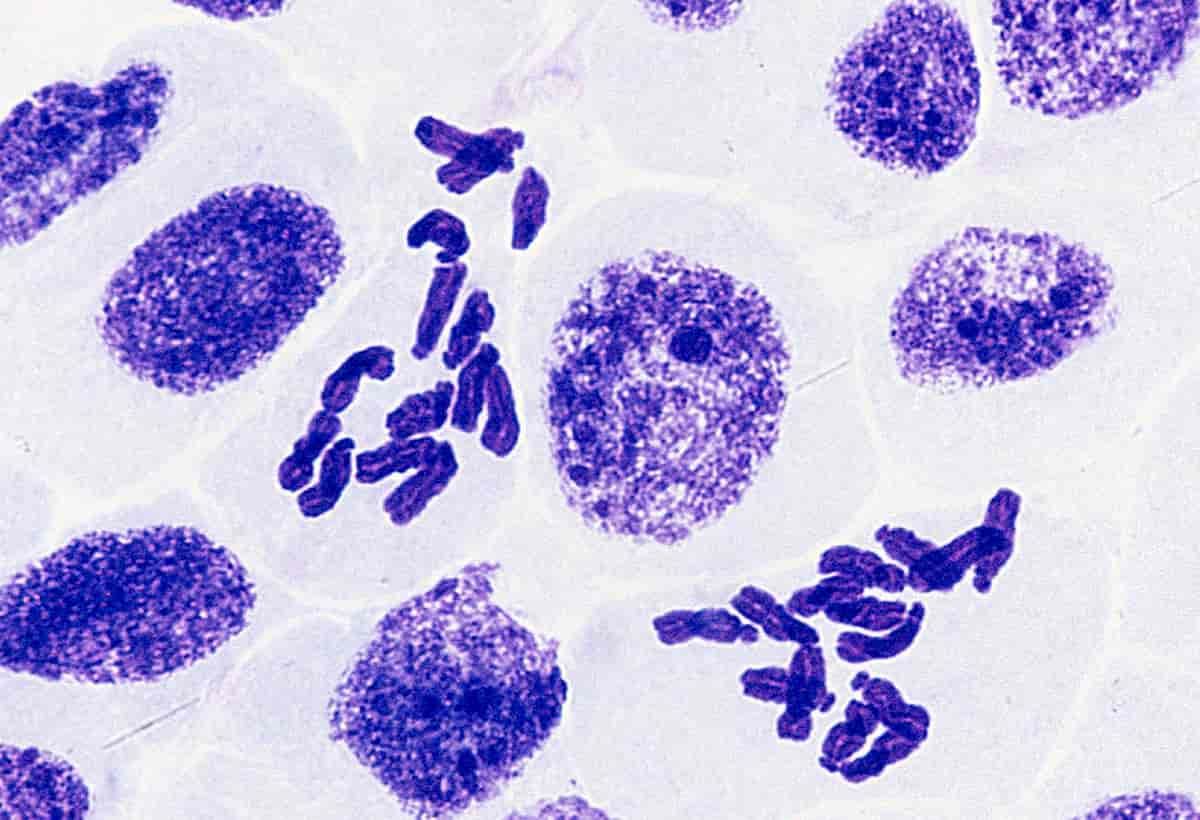
Josef Reischigのカバー画像/ウィキメディア·コモンズ.