

種子植物の有性生殖は、花粉粒 (雄性配偶体) が適合する柱頭の表面に着地したときに始まり、そこで水和して代謝を再開します。 花粉管は、女性の組織から卵巣への化学的手がかりによって花柱を通って導かれる花粉開口部から出てきます。 卵巣内では、花粉管が子門を通って受精胚珠に入り、受精嚢内の雄配偶子(雌配偶体)を受精させます。
花粉管は、頂点で極性の成長を示す急速に成長する細胞です。 花粉管の成長は、ゴルジ体由来の小胞の迅速かつ継続的な分泌によって促進されます。この小胞は、花粉管の先端で原形質膜とドッキングして融合し、新しい原形質膜と細胞壁の前駆体を提供します。 花粉管の細胞壁は、構造も機能も植物体細胞とは異なります。 先端では、花粉管壁は、主に新しく合成されたペクチンで構成される一次壁によって形成されます。 この一次壁は、花粉管シャンクの細胞壁の外層を形成し、細胞膜に隣接して二次カロース壁が堆積します。 花粉管のセルロース含有量は著しく低く、細胞内局在は種によって異なります。
花粉管壁のダイナミクスは、受精の成功における重要な特徴であり、花粉管形状の物理的制御、機械的損傷に対する雄配偶子の保護、雌しべ伝達組織への花粉管の接着、および膨圧に対する抵抗など、複数の機能を示します。 . しかし、分子レベルでは、花粉と雌しべの間のこの重要な相互作用はどのように機能するのでしょうか?
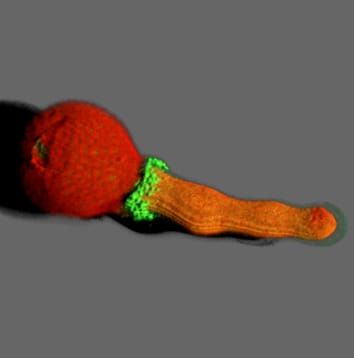
での新しい研究 Annals of Botany オリーブにおけるいくつかのペクチンとアラビノガラクタンタンパク質エピトープの時間経過と空間分布に関する新しい情報を提供します(オリーブ L.) 花粉発芽のさまざまな段階での花粉を調べ、花粉と雌しべの相互作用の文脈でそれらの推定機能について説明します。 著者らは、ガラクタンが花粉管に機械的安定性を提供し、張力ストレスや機械的損傷に特に敏感な領域を強化する可能性があることを示唆しています。 一方、アラビナンとAGPは、花粉管と花柱伝達細胞、卵子と精子細胞の認識と接着現象に重要である可能性があります。
発芽および花粉管成長中のオリーブ花粉中のペクチンおよびアラビノガラクタンタンパク質の電気泳動プロファイリングおよび免疫細胞化学的検出。 (2013) Annals of Botany 112 (3): 503-513 土井: 10.1093/aob/mct118
細胞壁ペクチンとアラビノガラクタンタンパク質 (AGP) は、花粉管の成長に重要です。 この作業の目的は、発芽中のオリーブ花粉中のこれらの化合物の時間的および空間的ダイナミクスを研究することでした。 7つの抗ペクチン(JIM5、JIM5、LM6およびLM13)および14つの抗AGP(JIM1およびJIM4)モノクローナル抗体を使用して、共焦点および透過型電子顕微鏡免疫細胞化学検出技術と組み合わせた免疫ブロットプロファイリング分析を実施しました。 ペクチンと AGP のレベルは、オリーブ花粉の in vitro 発芽中に増加しました。 (1 → 5)-β-D-ガラクタンは、栄養細胞の細胞質、花粉壁、開口部内臓に局在します。 花粉管が出現した後、ガラクタンは花粉管壁、特に先端に局在し、発芽口の周りに襟のような構造を形成しました。 (13 → 13)-α-L-アラビナンは主に花粉管の細胞壁に存在し、先端下帯に特徴的なリング状の沈着物を規則的な間隔で形成していました。 予想通り、花粉管壁は頂点に高度にエステル化されたペクチン化合物が豊富に含まれていましたが、細胞壁は主にシャンクに脱エステル化されたペクチンを含んでいました。 生殖細胞の壁は、アラビナン、高度にメチルエステル化されたホモガラクツロナン、および JIMXNUMX エピトープで特異的に標識されていました。 さらに、エキシンの外側層を覆う細胞外物質は、アラビナン、脱エステル化ペクチン、および JIMXNUMX エピトープに富んでいました。 ペクチンと AGP は、花粉の発芽時に花粉管で新たに合成されます。 これらの化合物の合成と分泌は、時間的および空間的に調節されています。 ガラクタンは花粉管に機械的安定性を提供し、張力応力 (花粉管と花粉粒の結合部位) と機械的損傷 (先端) に特に敏感な領域を強化する可能性があります。 アラビナンとAGPは、花粉管と花柱伝達細胞、卵子と精子細胞の認識と接着現象に重要である可能性があります。